


ГЕОХРОНОЛОГИЯ
ЭВОЛЮЦИЯ
ЭВОЛЮЦИОННОЕ УЧЕНИЕ
ПАЛЕОКЛИМАТОЛОГИЯ
ПАЛЕОЭКОЛОГИЯ


Экология и тафономия
Фораминиферы играют существенную роль в фауне современных морей, особенно в планктоне тропического и субтропических поясов, распространяясь и за пределы последних, следуя в основном направлению теплых поверхностных течений. Планктонные фораминиферы обитают преимущественно в верхних слоях пелагиали (0-100 м), хотя и встречаются до глубины около 1000 м.
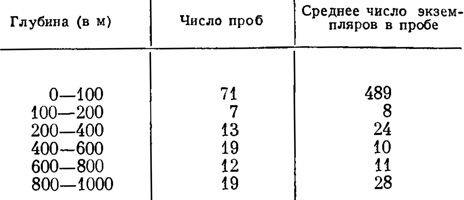
Вертикальное распределение планктонных фораминифер в экваториальной части Атлантики (по Schott, 1935, из Phleger 1945)
Однако, как указывает Фледжер, в ряде случаев на глубине 1000 м отмечается большее обилие фораминифер, чем на 100-метровой. Вместе с тем он отмечает ряд недочетов в методике Шотта и приводит более точные данные. Весьма существенно, что Фледжер, применяя биуретову реакцию, дифференцирует раковины живых и отмерших фораминифер в планктонных пробах. Фораминиферы в планктонных пробах составляют всего лишь около 1% общего количества организмов. При этом на глубине порядка 1000 м их насчитывается 1,5-4,6 экз. на 1 м3 воды. Раковины планктонных фораминифер, падая на дно, принимают участие в образовании танатоценозов глобигеринного, птероподового и различных терригенных илов, в основном - голубого. При этом область распространения глобигеринового и близких к нему илов ограничена изобатой около 4000 м или несколько более. Падающие в виде "дождя" раковины отмерших планктонных фораминифер значительных глубин не достигают, растворяясь в морской воде в условиях низких температур и значительных давлений. На глубинах свыше 4000 м отлагаются, как известно, в основном абиссальные глины, на поверхности которых обитают отдельные редкие виды бентических фораминифер с агглютинированной раковиной.
По данным Шотта (Schott, 1935, 1938) и Фледжера (Phleger, 1945), состав раковины отмерших планктонных фораминифер на поверхности донных осадков более или менее точно отражает видовой состав форм, обитающих в верхних слоях пелагиали. Это объясняется значительной скоростью погружения раковин, которая при размерах 0,4, мм равняется примерно 2 см/сек (т. е. около 1000 м за 14 часов; Зенкевич, 1951). Фораминиферы в современных глобигериновых илах являются породообразующими организмами. Среднее по весу содержание раковин пелагических фораминифер в глобигериновых илах 53,10%, минимальное 10-15% при общем содержании карбоната кальция не менее 30% (Andree, 1920). По Брэдли (Bradley, 1940), к глобигериновым илам относятся глубоководные осадки с содержанием планктонных фораминифер не менее 50%. В птероподовом и особенно в терригенных илах раковин планктонных фораминифер меньше. Скорость образования глобигеринового ила определяется весьма незначительной величиной порядка от 0,5 до 2,0 см с лишним за тысячелетие. Такая скорость седиментации вполне достаточна для отложения в течение геологической эпохи, длительностью порядка десятка млн. лет, осадочной толщи до 200 м мощностью. Содержащий подчас большое количества раковин планктонных фораминифер белый мел представляет более мелководные образования, чем современные глобигериновые илы. На это указывает значительное содержание бентических форм в белом мелу и другие его, в том числе литологические, особенности. Ближе к современным глобигериновым илам стоят некоторые фациальные разности фораминиферовых мергелей палеогена С. Кавказа, в которых, при содержании: 80,2-90,6% карбоната кальция, наблюдаются массовые скопления раковин планктонных фораминифер (табл. I, фиг. Г, Д), а бентические формы почти вовсе отсутствуют (Субботина, 1952). При этом необходимо отметить, что современные глобигериновые илы представляют собою образования, типичные для океанических впадин, белый же мел и палеогеновые фораминиферовые мергели отлагались в условиях эпиконтинентальных или выполнявших области предгорных прогибов бассейнов. Глубина этих водоемов измерялась, очевидно, несколькими сотнями метров. Раковины планктонных фораминифер встречаются, в виде исключения, в довольно значительных количествах в заведомо мелководных осадках. Так, например, в карбонатных отложениях некоторых из океанических о-вов Фиджи раковины сем. Globigerinidae - составляют до 20% по объему, наряду с остатками бентических фораминифер, известковых водорослей, кораллов, брахиопод, моллюсков и морских ежей. Планктонные фораминиферы в данном случае заносились в мелководные лагуны поверхностными течениями.
Основным экологическим фактором, определяющим распространение современных планктонных фораминифер, является температура. Нет никаких оснований предполагать, что этот фактор имел меньшее значение в геологическом прошлом. Среди планктонных фораминифер удалось выделить холодноводные (арктические и антарктические) формы (рис. 27), формы умеренного пояса, и, наконец, тепловодные (тропические и субтропические) (Schott, 1935; Cushman and Henbest, 1940; Phleger, 1945; Wiseman and Ovey, 1950; Sigal, 1952; см. также Сигаль, 1956). На приведенной ниже таблице показаны соотношения холодноводных, умеренных и тепловодных форм в различных поясах Мирового океана (рис. 27, 28).
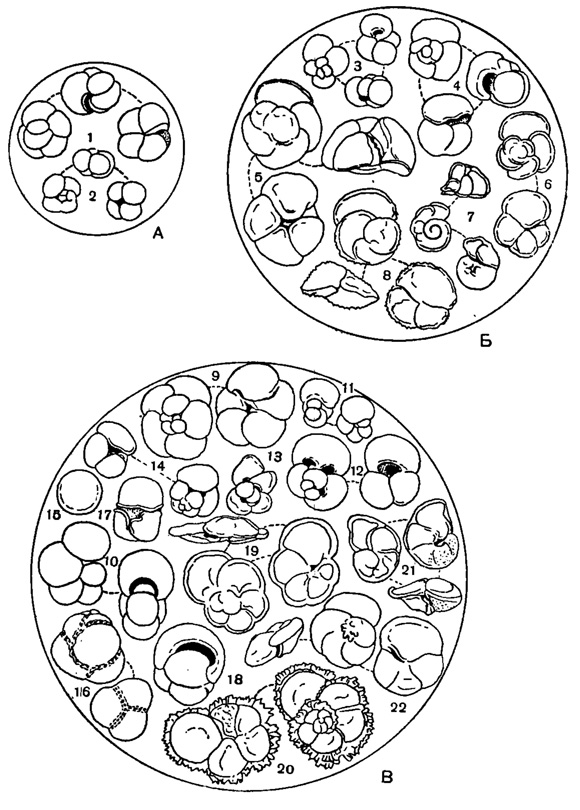
Рис. 27. Комплексы планктонных фораминифер различных климатических поясов: А - Холодноводные - арктические в антарктические планктонные фораминиферы: 1 - Globlgerina duterlrel Orbigny; 2 - G. pachyderma (Ehrenberg); Б - Планктонные фораминиферы умеренно теплых вод; 3 - Globlgerina bulloides Orbigny (выносят относительно холодноводные условия, например области Гвинейского течения, Schott, 1935); 4 - G. inf lata Orbigny (более стенотермная, чем предыдущая; выносит повышение температуры); 5 - Globorolalia crassula Cushman et Stewart; 6 - Gl. canariensfs (Orbigny); 7 - Truncorotalia truncatulinoides (Orbigny); 8 - Globorotalla hirsuta (Orbigny); В - Тепловодные тропические и субтропические фораминиферы: 9 - Globigerina dubia Egger; 10 - Globigerlnella aequllalerails (Brady); 11 - Globigertnella aequilateralis var. involuta Cushman; 12 - Globigerinoides ruber (Orbigny); 13 - Gls. sacculiferus (Brady); 14 - Gls. conglobatus (Brady); 15 - Orbulina universa Orbigny; 16 - Candelna nlilda (Orbigny); 17 - Sphaeroidlnella dehiscens (Orbigny); 18 - Pulleniatina obliquiloculata (Parker et Jones); 19 - Globorotalia menardii (Orbigny); 20 - Gl. menardii var. fimbrlata (Brady); 21 - Gl. iumida (Brady); 22 - Gl. scltula (Brady). (Brady, Parker, Phleger, Ovey; из Sigal, 1952)
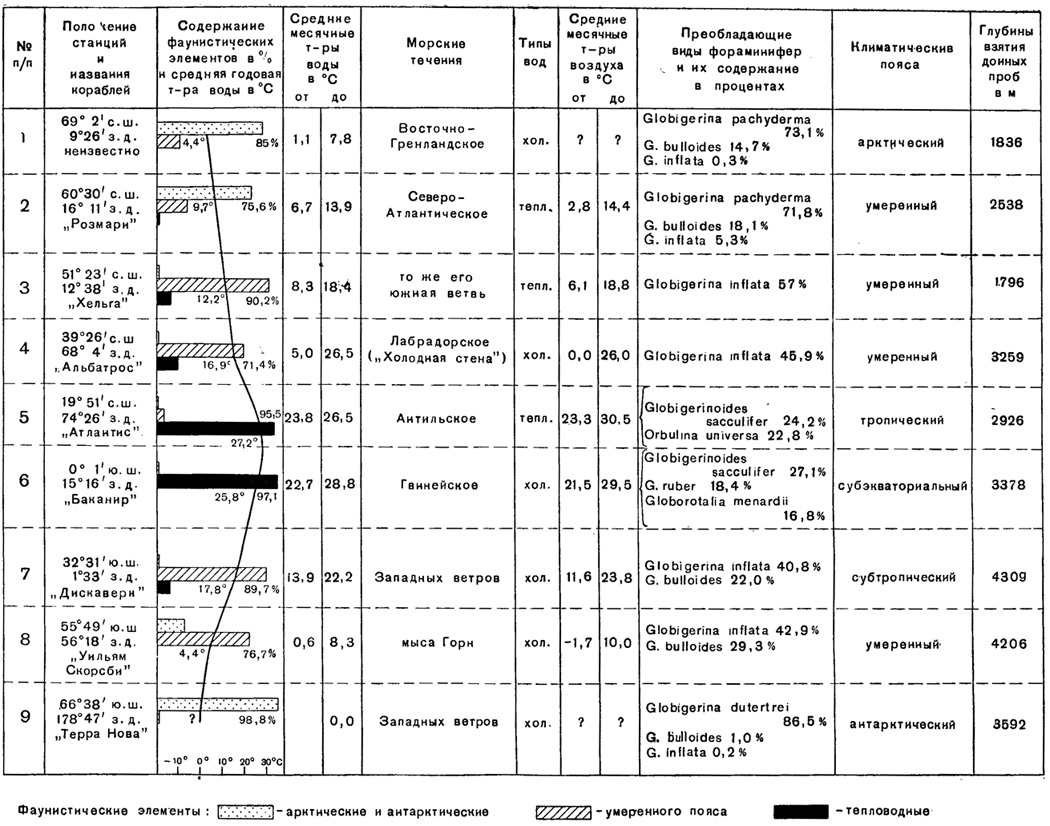
Рис. 28. Планктонные фораминиферы - индикаторы температурных условий (по грунтовым пробам) (Wiseman and Ovey, 1950; из Sigal, 1952)
При изучении взятых со дна океана колонок грунта удалось установить, что на различных уровнях от поверхности осадка встречаются неодинаковые комплексы планктонных фораминифер: прослои, содержащие холодноводные формы, чередуются с прослоями, заключающими в себе раковины тепловодных фораминифер. Господство холодноводных форм объясняется отложением содержащих эти формы прослоев в отрезки времени, отвечающие общему похолоданию в отдельные ледниковые эпохи четвертичного периода, тогда как межледниковьям и отдельным интерстадиалам, а также современной эпохе (голоцену) соответствуют прослои, содержащие теплолюбивые формы (Schott, 1935; Bradley, 1940; Cushman and Henbest, 1940). Дальнейшее изучение колонок океанических грунтов, сопровождавшееся радиологическими определениями абсолютного возраста, подтвердило эту концепцию (Phleger, 1948; Wiseman and Ovey, 1950). На приведенном ниже графике (рис. 29) показаны относительные колебания температуры поверхностных слоев морской воды на основании изучения распределения видов планктонных фораминифер в 15-метровой колонке грунта, взятой со дна Карибского моря (Phleger, 1948; Ovey, 1949).
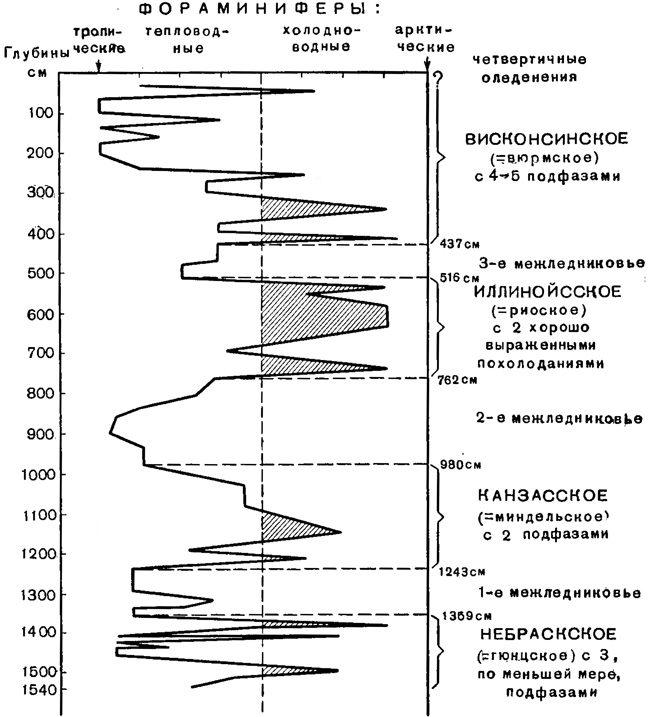
Рис. 29. Относительные колебания температуры поверхностных слоев воды в Карибском море в течение четвертичного периода по данным изучения процентного содержания тепловодных и холодноводных фораминифер в 15,4-метровой колонке грунта (станция 10 'Альбатроса'; 1947) (Phleger, Ovey, 1949; из Sigal, 1952)
Фораминиферы имеют немаловажное значение в современном бентосе. В арктических и антарктических морях зональность в их распространении по областям различных глубин выражена значительно слабее, чем в бореальных, особенно субтропических и тропических. Это объясняется тем, что основным экологическим фактором распространения бентических фораминифер, как и планктонных, является температура.
В батиальной и абиссальной областях арктических и отчасти бореальных морей, где широко распространены бурые, а местами диатомовые и радиоляровые илы, обитают различные агглютинированные формы, в основном из родов Rhabdammina, Rhizammina, Hyperammina, Haplophragmoides, Trochammina и др. Иногда в массовых количествах встречаются милиолиды из рода Pyrgo ("Biloculina"), играющие существенную роль в образовании так называемых билокулиновых илов. К указанным формам примешиваются представители родов Cibicides, Nonion, Elphidium, Entosolenia, Pullenia и др. Некоторые виды упомянутых родов [Reophax guttifer Brady, Cibicides wuellerstorfi (Schwager) и др.] являются абиссальными космополитами. Основную массу видов, распространенных в Арктике, составляют эврибатные космополиты, к которым примешиваются арктические и бореальные формы. Некоторые глубоководные космополиты выходят в арктических областях в неритовую область, где достигают подчас массового развития (Hyperammina subnodosa Brady и др.) (по Щедриной, 19553, 1956). В неритовой области арктических и бореальных морей характерны комплексы фораминифер, отличные от глубоководных в видовом отношении, но близкие по составу родов. Для отдельных участков морского дна отмечаются в тоже время особые группировки видов, обусловленные местными физико-географическими условиями.
В силу низких температур абиссальная область тропического и субтропического поясов близка по систематическому составу обитающих здесь донных фораминифер к глубоководной области полярных и бореальных бассейнов. Фауна фораминифер батиальной и, в особенности, абиссальной областей различных климатических поясов в соответствии с этим также довольно однообразна.
Зональность распределения донных фораминифер в современных арктических и отчасти бореальных морях в зависимости от температурных условий, глубин и отчасти солености была выявлена работами Щедриной (1950, 1952, 1956) и, отчасти, Саидовой (1955). Для дальневосточных морей, омывающих СССР, Щедрина устанавливает следующие особенности распределения видов фораминифер по глубинам (рис. 30).
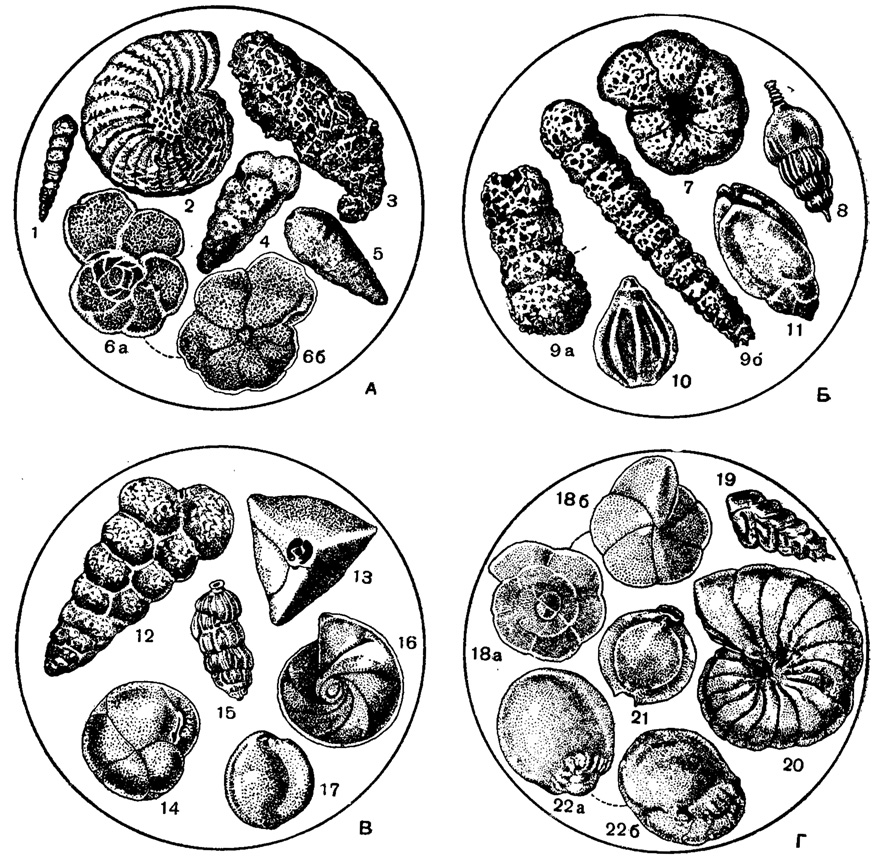
Рис. 30. Комплексы бентических фораминифер различных глубинных зон дальневосточных морей: А - фораминиферы сублиторальной зоны (до 50 м): 1 - Ammofrondicularia arctica (Brady), × 40; 2 - Elphidium oregonense var. recens Stschedrina, × 12; 3 - Ammobaculiiescassis var. inflaia Stschedrina, × 9, 6; 4 - Verneuilina advena (Cushman), × 52; 5 - Hippocrepina indivisa Parker, × 20; 6 - Cibicides lobaiulus (Walker et Jacob): а - со спинной стороны, б - с брюшной стороны, × 20 (виды 3-5 встречаются и в псевдоабиссали); Б - фораминиферы псевдоабиссальной зоны (50-200 м): 7 - Alveolophragmium orbiculatum Stschedrina, × 9,6; 8 - Nodosaria scalaris (Batch), × 25,6; 9 - Reophax bacillaris Brady: а - мегасферическая, б - микросферическая форма, × 44; 10 - Lagena acuticostata Reuss, × 32; 11 - Bulimina auricvlata (Bailey), × 40 (вид 9 заходит в батиальную зону, а 11 - в область абиссали); В - фораминиферы верхней части батиальной зоны (200-750 м): 12 - Karreriella baccata (Schwager), × 20; 13 - Triloculina tricarinata var. convexa Cushman, × 9,6; 14 - Cassidulina californica Cushman, x 20; 15 - Uvigerina peregrina Cushman, × 25,6; 16 - Robulus Orbignyi (Bailey), × 6,4; 17 - Sigmoilina sigmoidea (Brady), × 32 (виды 15-17 появляются в нижней части псевдоабиссали; виды 12-16 заходят в нижнюю часть батиальной зоны); Г - фораминиферы нижней части батиальной зоны: (750-2000 м); 18 - Eponides ienerus (Brady); а - со спинной стороны, б - с брюшной стороны, × 40; 19 - Bolivina (Grammostomum) subspinescens Cushman, × 52; 20 - Cyclammina cancellala Brady, × 6,4; 21 - Pyrgo murrhina (Schwager), × 32; 22 - Chilostomellina fimbriata Cushman: а - с устьевой стороны, б - сбоку, × 20 (вид 22 появляется в псевдоабиссали; 19-21 - с нижней части верхней бациали; вид 18 распространен вплоть до сверхабиссали) (по Щедриной, 1952)
1. Литоральная зона, отличающаяся в дальневосточных морях резкими колебаниями температур (годовая амплитуда в Японском море до 20°, в Охотском 10-15° и в Беринговом 7-10°) и известным опреснением. На литорали Курильских о-вов были обнаружены эврифациальные Elphidium crispum (Linne), Quinqueloculina araucana Orbigny и Q. lutea Orbigny, вряд ли представляющие собою характерные для литорали формы, поскольку встречаются и на больших глубинах.
2. Сублиторальная зона (до 50 м) также отличающаяся значительными колебаниями температур. Здесь в холодноводных условиях развивается ряд видов, встречающихся в сублиторали арктических морей: Hippocrepina indivisa Parker, Reophax curtus Cushman, Ammobaculites cassis (Dawson), Spiroplectammina biformis (Parker et Jones), Verneuilina advena Cushman, Trochammina fissuraperta Stschedrina, Etphidium oregonense Cushman et Grant и др. В областях влияния тихоокеанских теплых вод встречаются Quinquloculina caveriana Orbigny, Nonion boueanus (Orbigny), Strebtus beccarii (Linne) и др.
3. Псевдоабиссальная зона (50-200 м). Донная температура в Охотском море (по Саидовой, 1955) 1,5°, соленость менее 33,5‰. Холодноводная группа видов, характерная для северных Частей дальневосточных морей и распространяющаяся к югу, следуя за холодными течениями, представлена общими и для арктических бассейнов Reophax finiens (Parker), Miliammina agglutinata (Cushman), Labrospira crassimargo (Norman), Robertina arctica Orbigny и др. Специфические для дальневосточных морей формы: Alveolophragmium orbiculatum Stschedrina с его разновидностью var. ochotensis Stschedrina, Textularia сопка (Orbigny) и др.
В этой зоне, в областях распространения тихоокеанских вод встречаются Robulus calcar (Linne), R. cuttratus Montfort, Eponidus repandus (Fichtel et Moll), Noniongrateloupi (Orbigny), Bulimina auriculata (Bailey).
Батиальная зона или область материкового склона отличается следующими условиями (по Саидовой, 1955): температура воды 0-2,4°, соленость 33,75-34,5‰.
4. Верхняя часть батиальной зоны (200-750 м). Характерны общие и для арктического бассейна Rhabdammina discreta Brady, Rh. cornuta Brady, Cornuspira involvens Reuss и др. Специфические для дальневосточных морей формы: Cassidulina californica Cushman, Rarreriella baccata (Schwager) и др.
5. Нижняя часть батиальной зоны (750-2000 м). Распространены встречающиеся и в дальневосточных и в арктических морях Haplophragmoides subglobosus (Sars), Dentatina obliqua (Linne), Eponides tenerus (Brady) и др. Специфические дальневосточные формы: Chitostomellina fimbriata Cushman и др.
6. Абиссальная зона (2000-5000 м). Донная температура во впадинах Охотского моря 1,8-2,3°, соленость 34,5-34,7‰. Общие для Тихого и Северного Ледовитого океанов: Astrorhiza crassatina Brady, Reophax distans Brady, R. guttifer Brady и др. Тихоокеанские виды: Rhabdammina linearis Brady, Trochammina globigeriniformis (Parker et Jones) и др.
7. Щедрина выделяет для Тихоокеанского бассейна еще одну зону - сверхабиссальную (свыше 5000 м), для которой характерны Reophax bacillari Brady, Hormosina gtobulifera Brady и др.
В бентосе мелководных зон морей умеренного и субтропического поясов развиваются преимущественно известковые фораминиферы с тонкостенной раковиной. В пределах названных поясов подобные же формы населяют и область континентального склона, верхнюю его часть, во всяком случае. Однако зональность в распространении различных видов фораминифер по глубинам выражена в умеренных и субтропических (а также и тропических) областях в более резкой форме, чем в арктических и бореальных. Это объясняется в основном более значительными изменениями температур с глубиной. Зональность в распределении бентосных фораминифер тепловодных областей может быть проиллюстрирована рядом примеров.
Так, для области, расположенной к югу от Флориды, Нортоном (Norton, 1930) были установлены следующие зоны, для донных осадков, каждой из которых характерны свои виды фораминифер:
А. От берега до глубины 9 м, колебания температур 25,5-31,4°. Преобладают Miliolidae и Peneroplidae, местами Valvulinidae (Ataxophragmiidae), Calcarinidae, Homotremidae и Nonionidae.
Б. Глубины 9-110 м, температуры 18,9-24,8°. Господствуют Lagenidae, Textulariidae, Buliminidae, Amphisteginidae; количество Miliolidae и Peneroplidae несколько сокращается.
В. Глубина 900-1500 м, температура 4,0-7,6°. Преобладают планктонные Globigerinidae и Globorotaliidae; значительную роль играют Lagenidae и Buliminidae, Anomalinidae встречаются на всех глубинах. Комплекс видов смешанный; в его состав входят обитающие на дне и попавшие из пелагиали формы.
Г. Глубина 3650-5200 м, температура 1,8-2,0°. Комплекс видов, близкий к распространенному в зоне В.
Зависимость распространения современных фораминифер в более северном районе о. Лонг Айленд (у берегов С. Америки) от условий температуры, глубины и отчасти солености была изучена Фледжером (Phleger, 1945) и Паркер (Parker, 1948).
В работе Паркер приведен весьма наглядный график изменения максимальных и минимальных годовых температур с глубиной и указаны изменения солености морской воды в пределах верхних 300 м (рис. 31). Паркер выделяет следующие зоны, характеризующиеся каждая своим комплексом видов фораминифер:
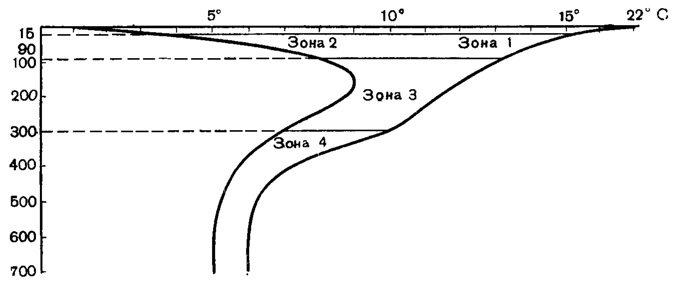
Рис. 31. Годичные колебания донной температуры и солености на различных глубинах в районе о-ва Лонг Айленд (Parker, 1948, из Sigal, 1952)
1. Глубина 0-15 м. Обилие Elphidium и Streblus baccarii (Linne), Quinqueloculina semitiulum (Orbigny), Eggerela advena Cushman.
2. Глубина 15-90 м. Преобладание Miliolidae, Eggeretla advena (Cushman), Trochammina lobata, Buliminidae, Polymorphinidae и некоторые Nonionidae и Anomalinidae.
3. Глубина 90-300 м. Преобладание Lagenidae, почти исключительно приуроченных к этой зоне; кроме того, присутствуют Textulariidae, Trochamminidae, Miliolidae, Discorbidae, Buliminidae, Anomalinidae, Nonionidae, Epistominidae, Chilostomellidae.
4. Глубина 300-700 м. Lagenidae становятся очень редкими. Преобладают Buliminidae, Ammosphaeroidina sphaeroidiniformis (Brady), Martinottiella nodulosa (Cushman), Cassidulinita; реже встречаются Valvulina conica (Brady), Karrerietta bradyi (Cushman), Pseudoglandulina occidentalis (Cushman) и Bolivina subspinescens (Cushman).
Интересные и новые данные касаются зонального распределения фораминифер в Карибском море (Lowman, 1949). Меридиональный профиль, по которому отбирались образцы, начинается в пресноводных лагунах дельты Миссисипи, пересекает район полузамкнутых опресненных заливов, область солоноватоводного мелкого моря, материковой ступени, материкового склона и заканчивается в абиссали.
Сходная с установленной для Атлантического и Карибского морей зональность была выявлена для Тихого океана у побережья Калифорнии (Natland, 1933). Здесь было установлено пять зон.
1. Неглубокие воды сублиторали 0,3 м при отливе и 1,5-2 м во время прилива, температура воды в августе 24,5°, в январе 5,7°. Встречаются Trochammina inflata (Montagu) и Streblus beccarii (Linne). Последний вид у Тихоокеанского побережья Центральной Америки спускается до глубины 100 м, где температура 14-16° (зимняя температура мелководных лагун. Калифорнии).
2. Глубина 3-40 м, донная температура 21,4 и 13,2°. Характерны многочисленные Nonion scapha (Fichtel et Moll), Elphidium, Buliminella elegantissima (Orbigny), Eponides ornatus (Orbigny) и др.
3. Глубина 40-275 м, температура 13,2 и 8,5°. Встречаются Cassidulina calipkornica Cushman et Hughes, Eponides repandus (Fichtel et Moll), Polymorphina charlottensis Cushman, Quinqueloculina akneriana Orbigny, Robertina scharlottensis (Cushman), Sigmomorphina frondiculariformis (Galloway et Wissler), Triloculina trigonula (Lamarck). У побережья Центральной Америки - Buliminidae.
4. Глубина 275-1800 м, температура 8,5 и 4°. Обнаружены Cassidulina cushmani Stewart et Stewart, Bolivina argentea Cushman, Bolivina subadvena var. spissa Cushman, Globobulimina pacifica Cushman, Uvigerina peregrina Cushman, Pseudoparrella pacifica (Cushman). Зона следует у берегов Центральной Америки за изотермой 8° (на 190 м глубже, чем у Калифорнии).
5. Глубина свыше 1800 м, температура 4 и 2,4°. Bulimina rostrata Brady, Nonion pacificum Cushman (у побережья Центральной Америки соответственно с 4140 и 2500 м) и Pullenia bulloides (Orbigny). Весьма существенно, что Натлэнду удалось обнаружить сходные комплексы фораминифер в ископаемом состоянии в Калифорнии и выяснить, исходя из данных изучения современной зональности, условия осадкообразования в отдельные моменты неогеновой эпохи.
Приведенные данные вполне определенно указывают на зависимость батиметрического распределения фораминифер в условиях солености, в основном близкой к нормальной, от температуры. Фактор солености имеет несколько иное значение. Фораминиферы, как правило, стеногалинные организмы, способные существовать лишь в условиях, ограниченных пределами колебаний нормальной солености морской воды. Лишь некоторые виды способны выдерживать известное повышение солености (например обитающие в Красном море Orbitolites при солености до 43‰ и др.). Условия более или менее значительного опреснения в прибрежных частях современных морей, в их заливах, во внутренних морях, эстуариях и реликтовых бассейнах выдерживают лишь немногие эвригалинные виды фораминифер (в основном из родов Proteonitia, Ammobaculites, Trochammina, Streblus, Elphidium VL др., а также некоторые Miliolidae); в условиях очень значительного опреснения встречаются некоторые приспособившиеся к этим условиям специфические формы, не свойственные бассейнам с нормальной соленостью.
Характеристику фораминифер ряда танатоценозов залива Аго (п-в Сима, префектуры Миэ, Япония) дает Морисима (Morishima, 1948).
Глубина залива до 25 м, pH 8,10-8,40, температура 20,2-23,5°, соленость 32,1-33,3‰, т. е. лишь незначительно пониженная в сравнении с нормальной. У входа в залив танатоценоз пелагических, занесенных сюда из открытого моря форм: Globigerinidae, Globorotatia, Тretomphalus, далее в проливе, ведущем в залив Аго, танатоценоз Amphistegina radiata, Elphidium crispum (Linne), более обильный на песчаном, чем на скальном грунте, Rotalia rosea Orbigny, Cibicides refulgetis Montfort, Quinqueloculina bradyana Cushman. Центральная часть залива занята танатоценозом Rotalia papillosa Orbigny, Quitiqueloculina lamarckiana Orbigny, Textutaria aff. foliacea Heron-Alien et Earland; все эти формы наиболее обильны на илистом грунте. В многочисленных мелких заливах - ответвлениях залива Аго танатоценозы Тrochammina globigeriniformis (Parker et Jones), Haplophragmoides, Elphidium fabum (Fichtel et Moll). У входа в ответвления залива к этому комплексу видов примешиваются формы смежного танатоценоза.
Несколько иные комплексы фораминифер приводятся Фледжером и Уольтоном (Phleger and Walton, 1950) для залива Марш (штат Массачусетс). Здесь выделяются следующие зоны, на составе комплексов фораминифер которых сказывается влияние солености.
1. Зона водорослей Spartina patens и S. glabra (первая заливается кратковременно, вторая погружается при каждом приливе). Соленость во время прилива 31,5-32‰, при отливе 25-31‰. Грунт, переполненный органическим веществом, алеврит или песок. Богатая фауна фораминифер: Trochammina inflata, Т. lobata, Т. cf. rotaliformis, T. (Jadammina) macrescens, Miliammina fusca. Эти виды встречаются и в других зонах, но здесь в наибольшем количестве. Специфические формы: Armorella sphaerica, Webbinella (?) sp. и Valvulineria sp. Виды Elphidium практически отсутствуют.
2. Зона литоральных отмелей. Соленость 21-31‰, грунт песок или алеврит с незначительным содержанием органики, с фрагментами раковин. Сильные приливно-отливные течения. Растительность отсутствует. Бедная фауна фораминифер: главным образом Trochammina squamata, реже Т. (Jadammina) macrescens.
3. Зона зостеры всегда погруженная. Соленость в проливе 31-32‰, в самом заливе 27,5-31,5‰. Грунт алеврит, песок, вплоть до грубозернистого; органики мало. Trochammina squamataf Cribroelphidium incertum, Elphidiella arctica и формы первой зоны, но в иных процентных отношениях.
4. Зона открытого залива Кейп Код. В мелководной (до 20 м) части грунт песчанистый с Eggerella advena и Proteonina atlantica, составляющими 90% микрофауны. В более глубоководной части (20-30 м) грунт илистый, либо песчаный, с более богатой фауной фораминифер; преобладающие Cribroelphidiumincertum, Elphidiella arctica и Тrochammina squamata, кроме того, Ammodiscus sp., Ammotium cassis, Elphidium articulatum, Eponides frigidus var. calidus, Glomospira, cf. gordialis, Quinqueloculina seminulum и др. Reophax scorpiurus Montfort, R. scotti, R. curtus.
Для эстуа